
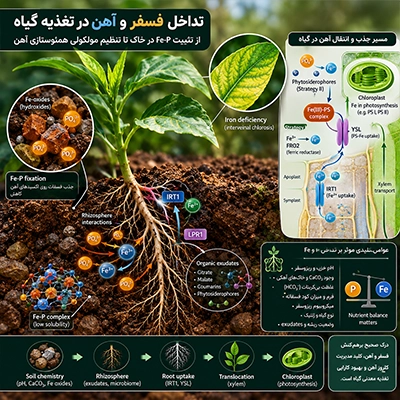
تعامل فسفر و آهن را نمیتوان با مفهوم ساده «رقابت دو عنصر» توضیح داد. این رابطه از adsorption و precipitation در سطح اکسیدهای آهن آغاز شده و در ریزوسفر با ترشحات ریشه و فعالیت میکروبی تغییر میکند؛ سپس در سطح غشای سلولی به شبکه انتقالدهندههایی مانند IRT1 و سامانههای تنظیمی جذب Fe میرسد و در نهایت با فرآیندهایی مانند ذخیرهسازی آهن، انتقال به کلروپلاست، تنظیم ROS و کنترل بیان ژنهای پاسخدهنده به کمبود عناصر ادامه پیدا میکند. در نتیجه، افزایش فسفر میتواند در برخی شرایط، خصوصاً در خاکهای مستعد کلروز آهن، وضعیت Fe را پیچیدهتر کند؛ اما شدت و جهت این اثر به pH، کانیشناسی، اکسیدهای آهن، وضعیت کربنات، مقدار P قابلجذب، ژنوتیپ گیاه، میکروبیوم ریزوسفر و شرایط رشد وابسته است. از دیدگاه تغذیه معدنی مدرن، بنابراین نمیتوان آهن و فسفر را بهصورت دو ورودی مستقل در نظر گرفت. این دو عنصر بخشی از یک network of nutrient homeostasis هستند که در مقیاس خاک–ریزوسفر–ریشه–آوند–کلروپلاست عمل میکند.
تداخل فسفر و آهن در تغذیه گیاه؛ از تثبیت Fe-P در خاک تا تنظیم مولکولی همئوستازی آهن
برهمکنش فسفر (Phosphorus; P) و آهن (Iron; Fe) یکی از پیچیدهترین روابط آنتاگونیستی در سامانه تغذیه معدنی گیاه محسوب میشود؛ رابطهای که صرفاً به رقابت ساده میان دو عنصر برای جذب از ریزوسفر محدود نیست، بلکه مجموعهای از فرآیندهای ژئوشیمیایی، کلوئیدی، ردوکس، فیزیولوژیک، مولکولی و سیگنالینگ تغذیهای را در بر میگیرد.
آهن اگرچه از عناصر نسبتاً فراوان پوسته زمین است، اما fraction قابلجذب آن در بسیاری از خاکها بسیار محدود است. از سوی دیگر، فسفر نیز بهشدت مستعد تثبیت در فازهای معدنی خاک است. برهمکنش این دو عنصر میتواند از تشکیل کمپلکسها و سطوح Fe–P در خاک آغاز شده و تا تغییر بیان ژنهای مرتبط با جذب، انتقال و ذخیرهسازی Fe در گیاه ادامه پیدا کند.
به همین دلیل، مشاهده کلروز آهن در گیاهی که ظاهراً برنامه کودی مناسبی دریافت میکند، در برخی شرایط میتواند با بار فسفاتی بالا، نسبت P/Fe نامتعادل یا تغییر در توزیع سلولی آهن مرتبط باشد.
۱. چرا فسفر و آهن اساساً با یکدیگر برهمکنش دارند؟
فسفر در خاک عمدتاً به شکل گونههای فسفات غیرآلی، از جمله H₂PO₄⁻ و HPO₄²⁻، حضور دارد؛ در حالی که آهن در محیطهای هوازی عمدتاً تحت شرایط اکسیدکننده به شکل Fe(III) و در قالب اکسیدها، هیدروکسیدها و فازهای کممحلول یافت میشود.
سطوح اکسیدهای آهن دارای گروههای واکنشپذیر سطحی هستند که میتوانند فسفات را از طریق ligand exchange جذب کنند.
در نتیجه، واکنش میان فسفات و اکسیدهای آهن میتواند به شکل زیر سادهسازی شود:
≡Fe–OH + H₂PO₄⁻ → ≡Fe–H₂PO₄ + OH⁻
این نمایش صرفاً یک مدل مفهومی است و رفتار واقعی به کانیشناسی، pH، قدرت یونی، درجه بلورینگی اکسید آهن و حضور لیگاندهای رقیب وابسته است.
در خاکهای غنی از اکسیدهای آهن، جذب فسفات روی سطوح Fe oxide میتواند قابلیت تحرک و دسترسی زیستی فسفر را کاهش دهد؛ در مقابل، برهمکنش فسفات با سطح و فازهای آهن نیز میتواند بر قابلیت آزادسازی Fe اثرگذار باشد.
مطالعات جدید، این رابطه را بهعنوان یک Fe–P nexus چندلایه توصیف میکنند که در آن ویژگیهای خاک، میکروارگانیسمها و پاسخهای ریشه بهطور همزمان دخالت دارند.
۲. تشکیل کمپلکسهای Fe–P در خاک
در محیطهای اسیدی، واکنشپذیری Fe با فسفات میتواند افزایش یابد. یونهای فسفات به سطوح اکسیدها و هیدروکسیدهای آهن متصل شده و در شرایط خاص میتوانند تشکیل فازهای کممحلول یا کمپلکسهای Fe–P را تسهیل کنند.
از دیدگاه تغذیه گیاه، مسئله مهم این است که:
Total Fe ≠ Plant-available Fe
و به همان شکل:
Total P ≠ Plant-available P
بنابراین اندازهگیری صرف مقدار کل Fe و P برای پیشبینی وضعیت تغذیهای گیاه کافی نیست.
کسر قابلجذب هر عنصر تحت تأثیر pH، پتانسیل اکسایش–کاهش، ظرفیت تبادل یونی، ماده آلی، کربناتها، کانیهای رسی و فعالیت زیستی ریزوسفر قرار دارد.
این موضوع اهمیت ویژهای در تفسیر نتایج آزمون خاک دارد؛ زیرا یک خاک ممکن است از نظر Fe کل غنی باشد، اما fraction قابلجذب آن برای سیستم ریشهای ناکافی باشد.
۳. فسفر چگونه میتواند دسترسی آهن را تغییر دهد؟
یکی از مکانیسمهای مهم، جذب فسفات روی سطوح اکسیدهای آهن است.
سطح اکسید آهن تنها یک سطح منفعل نیست؛ بلکه یک interface شیمیایی فعال محسوب میشود که محل رقابت میان فسفات و لیگاندهای آلی مختلف است.
ریشه گیاه در شرایط کمبود Fe میتواند ترکیباتی مانند:
- citrate
- malate
- coumarins
- phenolic compounds
- phytosiderophores
را در ریزوسفر آزاد کند.
این ترکیبات قادرند با تغییر محیط شیمیایی ریزوسفر یا رقابت برای جایگاههای اتصال سطحی، در mobilization آهن نقش داشته باشند.
اما اگر سطح اکسید آهن قبلاً بهشدت توسط فسفات اشباع شده باشد، kinetics آزادسازی آهن ممکن است تغییر کند.
بنابراین فسفر نهتنها یک عنصر غذایی مستقل، بلکه بخشی از شیمی سطحی آهن در ریزوسفر محسوب میشود.
۴. چرا افزایش کود فسفاته همیشه به معنای افزایش رشد نیست؟
یک تصور ساده این است:
P بیشتر → رشد بیشتر
اما پاسخ گیاه به کود فسفاته خطی نیست.
پس از عبور از محدوده کفایت تغذیهای، افزایش بیشتر P میتواند نسبتهای یونی و تعادل عناصر را تغییر دهد.
در مورد آهن، شواهد تجربی نشان دادهاند که در برخی گونهها و شرایط، افزایش عرضه فسفر میتواند شدت کلروز آهن را افزایش دهد.
مطالعات انجامشده روی درخت زیتون در خاکهای آهکی نشان دادهاند که کوددهی فسفر در برخی شرایط میتواند Fe chlorosis را تشدید کند؛ شدت این اثر به ویژگیهای خاک، مقدار اکسیدهای آهن، وضعیت Fe قابلجذب و ویژگیهای گیاه وابسته بوده است.
بنابراین در خاکهای مستعد کلروز، افزایش کورکورانه مصرف کود فسفاته الزاماً تصمیم تغذیهای مناسبی نیست.
۵. نسبت P/Fe؛ چرا نسبت عناصر گاهی مهمتر از مقدار مطلق آنهاست؟
گیاه یک سیستم شیمیایی ایزوله نیست.
اگر Fe ثابت باقی بماند اما P بهشدت افزایش پیدا کند، ممکن است نسبتهای تغذیهای در خاک و بافت گیاه تغییر کنند.
در برخی مطالعات، شدت کلروز با افزایش نسبت available P / available Fe ارتباط نشان داده است.
از این منظر، سؤال مناسب صرفاً این نیست:
مقدار آهن خاک چقدر است؟
بلکه باید پرسید:
آهن قابلجذب نسبت به بار فسفاتی و سایر عوامل محدودکننده چه وضعیتی دارد؟
این دیدگاه، تغذیه گیاه را از مدل «عنصر منفرد» به سمت مفهوم nutrient stoichiometry و homeostasis چندعنصری منتقل میکند.
۶. داستان در ریشه پیچیدهتر میشود
برهمکنش P و Fe در خارج از گیاه متوقف نمیشود.
هنگامی که گیاه با کمبود فسفر مواجه میشود، معماری ریشه تغییر میکند:
- تغییر رشد ریشه اصلی
- افزایش تراکم root hairs
- تغییر نسبت ریشه به اندام هوایی
- تغییر الگوی ترشح exudates
- فعالشدن سیستمهای جذب فسفات
همزمان، وضعیت آهن نیز تحت تأثیر قرار میگیرد.
در گیاه مدل Arabidopsis، تجمع آهن در apoplast ناحیه مریستم و منطقه کشیدگی ریشه در پاسخ به کمبود فسفر با تغییر رشد ریشه ارتباط داده شده است.
در این فرآیند پروتئین LPR1 (LOW PHOSPHATE ROOT 1) و سیستم تنظیمی مرتبط با آن نقش مهمی دارند.
بنابراین آهن در شرایط کمبود فسفر صرفاً یک عنصر غذایی نیست؛ بلکه بخشی از سامانه signal transduction مرتبط با رشد ریشه محسوب میشود.
۷. LPR1؛ نقطه اتصال آهن، فسفر و رشد ریشه
LPR1 یک multicopper oxidase است که در تنظیم پاسخ ریشه به کمبود فسفر نقش دارد.
در شرایط P deficiency، تغییر وضعیت Fe در apoplast میتواند با تولید گونههای فعال اکسیژن یا ROS همراه شود.
افزایش ROS میتواند بر:
- deposition of callose
- plasmodesmata connectivity
- cell-wall properties
- meristem activity
- elongation-zone development
اثر بگذارد.
در نتیجه، کمبود فسفر میتواند از طریق تغییر در homeostasis آهن، رشد ریشه را نیز تغییر دهد.
این مکانیسم نشان میدهد که رابطه P–Fe یک antagonism ساده نیست؛ بلکه بخشی از یک regulatory network پیچیده است.
۸. IRT1؛ جایی که مسئله جذب آهن وارد سطح مولکولی میشود
در گیاهان Strategy I، آهن سهظرفیتی باید پیش از ورود به سلول ریشه احیا شود:
Fe³⁺ → Fe²⁺
سپس Fe²⁺ از طریق انتقالدهندههایی مانند IRT1 (IRON-REGULATED TRANSPORTER 1) جذب میشود.
اما IRT1 کاملاً اختصاصی Fe نیست.
این انتقالدهنده میتواند در جابهجایی برخی کاتیونهای دوظرفیتی دیگر نیز نقش داشته باشد.
به همین دلیل گیاه باید فعالیت IRT1 را بهصورت دقیق تنظیم کند تا در زمان تلاش برای افزایش جذب Fe، دچار ورود بیش از حد سایر فلزات نشود.
این موضوع یکی از نمونههای بارز nutrient homeostasis در سطح غشای سلولی است.
۹. وقتی فسفر زیاد است، چه اتفاقی برای جذب آهن میافتد؟
مطالعات فیزیولوژیک و مولکولی نشان دادهاند که وضعیت P میتواند بر جذب و توزیع Fe تأثیر بگذارد.
در برخی شرایط، افزایش P خارجی با کاهش uptake و translocation آهن همراه شده است.
این اثر میتواند در چند سطح اتفاق بیفتد:
خاک → ریزوسفر → سطح ریشه → جذب سلولی → انتقال درونگیاهی → تخصیص به کلروپلاست
بنابراین حتی اگر غلظت Fe در محیط ریشه افزایش پیدا کند، الزاماً به معنی افزایش Fe متابولیکی در برگ نیست.
۱۰. چرا ممکن است گیاه آهن داشته باشد اما باز هم کلروتیک باشد؟
این یکی از مهمترین نکات فیزیولوژی آهن است.
غلظت کل Fe در یک بافت لزوماً معادل physiologically active Fe نیست.
آهن میتواند در سلول:
- در ferritin ذخیره شود
- با organic ligands کمپلکس شود
- در apoplast تجمع پیدا کند
- در vacuole ذخیره شود
- وارد chloroplast شود
- در heme و Fe–S clusters مصرف شود
بنابراین:
Total Fe concentration ≠ Functional Fe status
در واقع یکی از چالشهای تشخیص کمبود آهن همین مسئله است.
ممکن است آنالیز بافتی غلظت قابلتوجهی از Fe را نشان دهد، اما توزیع سلولی یا وضعیت متابولیکی آهن با نیاز فتوسنتزی گیاه مطابقت نداشته باشد.
۱۱. ارتباط P–Fe با کلروپلاست و فتوسنتز
کلروپلاست یکی از اصلیترین محلهای مصرف آهن در برگ است.
آهن در ساختار و عملکرد سیستمهای انتقال الکترون فتوسنتزی از جمله:
- Photosystem I
- Photosystem II
- cytochrome b6f
- ferredoxins
- iron–sulfur proteins
نقش دارد.
به همین دلیل اختلال در homeostasis آهن میتواند عملکرد فتوسنتزی را کاهش دهد.
مطالعات مولکولی نشان دادهاند که شدت کلروز ناشی از کمبود Fe میتواند به وضعیت فسفر وابسته باشد؛ یعنی پاسخ کلروتیک گیاه صرفاً تابع مقدار Fe نیست، بلکه تحت تأثیر وضعیت P نیز قرار دارد.
در شرایط خاص، کاهش فسفر حتی میتواند شدت کلروز مرتبط با کمبود آهن را کاهش دهد.
۱۲. ROS؛ نقطه اتصال تغذیه معدنی و سیگنالینگ سلولی
گونههای فعال اکسیژن یا Reactive Oxygen Species معمولاً تنها بهعنوان عامل آسیب اکسیداتیو شناخته میشوند؛ اما در واقع ROS در غلظتهای کنترلشده نقش signaling نیز دارد.
برهمکنش P و Fe میتواند homeostasis ROS را تغییر دهد.
آهن به دلیل قابلیت تغییر وضعیت اکسیداسیون:
Fe²⁺ ⇄ Fe³⁺
توانایی مشارکت در واکنشهای redox را دارد.
در شرایط نامتعادل، واکنشهای وابسته به Fe میتوانند به تشکیل گونههای اکسیدکننده بسیار واکنشپذیر منجر شوند.
بنابراین گیاه باید همزمان دو مسئله را کنترل کند:
Fe sufficiency
و
Fe toxicity prevention
این همان مفهوم iron homeostasis است.
۱۳. نقش coumarins در ارتباط Fe و P
یکی از بخشهای جذاب این سامانه، ترشح ترکیبات فنولی و coumarinها از ریشه است.
در پاسخ به کمبود آهن، برخی گیاهان Strategy I میتوانند coumarinهایی مانند scopoletin و مشتقات آن را در ریزوسفر آزاد کنند.
این ترکیبات میتوانند بر:
- mobilization Fe
- فعالیت میکروبی
- redox chemistry
- ساختار جامعه میکروبی ریزوسفر
اثر بگذارند.
اما جالبتر اینکه وضعیت فسفر نیز میتواند این پاسخها را تعدیل کند.
بنابراین ریشه را باید یک biochemical interface فعال دانست؛ نه یک عضو منفعل که صرفاً یونهای محلول را جذب میکند.
۱۴. میکروبیوم ریزوسفر؛ ضلع سوم مثلث P–Fe
در سالهای اخیر مشخص شده است که رابطه P و Fe فقط بین خاک و گیاه اتفاق نمیافتد.
میکروارگانیسمهای ریزوسفری میتوانند با تولید:
- siderophores
- organic acids
- redox-active metabolites
- phosphatases
بر قابلیت دسترسی Fe و P اثر بگذارند.
برخی میکروارگانیسمها قادرند آهن را با siderophoreها کلاته کنند و برخی دیگر با اسیدیکردن میکرو محیط ریشه، انحلال ترکیبات معدنی را تغییر دهند.
از سوی دیگر، arbuscular mycorrhizal fungi (AMF) میتوانند مسیر دسترسی گیاه به فسفر و برخی ریزمغذیها را تغییر دهند.
بنابراین سیستم واقعی را بهتر است بهصورت زیر تصور کنیم:
Soil minerals ↔ Rhizosphere ↔ Microbiome ↔ Root ↔ Shoot
نه صرفاً:
Soil → Root
۱۵. آیا هر خاکی نسبت به تداخل P و Fe حساس است؟
خیر.
شدت این تعامل به مجموعهای از متغیرها وابسته است:
| متغیر | اهمیت در تعامل P–Fe |
|---|---|
| pH | تعیینکننده گونهبندی و حلالیت Fe و P |
| CaCO₃ | تنظیم ظرفیت بافری و شرایط قلیایی |
| Fe oxides | سطح مهم جذب فسفات |
| Fe crystallinity | مؤثر بر واکنشپذیری اکسید آهن |
| Organic matter | منبع لیگاندها و تغییردهنده شیمی ریزوسفر |
| Available P | تعیینکننده بار فسفاتی قابل واکنش |
| Available Fe | تعیینکننده وضعیت Fe قابلجذب |
| Redox potential | کنترل گونههای Fe²⁺ و Fe³⁺ |
| Root exudates | مؤثر بر mobilization |
| Microbiome | مؤثر بر چرخه Fe و P |
| Genotype | تعیینکننده تحمل و کارایی جذب |
بنابراین نسخه واحدی برای تمام خاکها و گیاهان وجود ندارد.
۱۶. خاک آهکی؛ جایی که مسئله پیچیدهتر میشود
در خاکهای آهکی، حضور CaCO₃ و سیستم کربنات–بیکربنات محیط ریشه را به سمت pH بالا سوق میدهد.
در چنین شرایطی، حلالیت بسیاری از گونههای Fe(III) کاهش مییابد.
حال اگر بار فسفاتی نیز بالا باشد، برهمکنش Fe–P میتواند به محدودیت بیشتر availability آهن منجر شود.
به همین دلیل phosphorus-induced iron chlorosis در برخی گیاهان حساس کشتشده در خاکهای آهکی اهمیت ویژهای دارد.
مطالعات میدانی روی زیتون نیز نشان دادهاند که اثر فسفر بر کلروز آهن به ویژگیهای خاک و مقدار اکسیدهای آهن وابسته است و در خاکهای فقیرتر از اکسیدهای آهن میتواند شدیدتر باشد.
۱۷. آیا اضافهکردن کود آهن میتواند مشکل را حل کند؟
در صورت وجود کمبود واقعی Fe، تأمین آهن میتواند ضروری باشد؛ اما پاسخ به کود آهن تابع chemistry و physiology سیستم است.
اگر عامل محدودکننده اصلی:
- pH بالا
- تثبیت Fe
- بیکربنات بالا
- سلامت ضعیف ریشه
- بار فسفاتی نامتعادل
- یا فرم نامناسب منبع Fe
باشد، صرف افزایش مقدار Fe الزاماً پاسخ مورد انتظار را ایجاد نمیکند.
به همین دلیل برنامه تغذیهای حرفهای باید از مدل:
«عنصر کم است → همان عنصر را بیشتر بده»
فاصله بگیرد.
مدل دقیقتر این است:
Diagnosis → Soil chemistry → Nutrient interaction → Source selection → Application strategy → Plant response
منابع علمی
- Doležal et al. (2024). The Phosphorus-Iron Nexus: Decoding the Nutrients Interaction in Soil and Plant. International Journal of Molecular Sciences, 25(13), 6992.
- Xie, X., Hu, W., Fan, X., Chen, H., & Tang, M. (2019). Interactions Between Phosphorus, Zinc, and Iron Homeostasis in Nonmycorrhizal and Mycorrhizal Plants. Frontiers in Plant Science, 10, 1172.
- Sánchez-Rodríguez, A. R., Cañasveras, J. C., del Campillo, M. C., Barrón, V., & Torrent, J. (2013). Iron chlorosis in field grown olive as affected by phosphorus fertilization. European Journal of Agronomy, 51, 101–107.
- Interdependent iron and phosphorus availability controls photosynthesis through retrograde signaling. Nature Communications.
- Ethylene and Nitric Oxide Involvement in the Regulation of Fe and P Deficiency Responses in Dicotyledonous Plants.
- Interaction Between Macro- and Micro-Nutrients in Plants. مرور تخصصی درباره cross-talk میان N، P، S، Fe و Zn در تغذیه گیاه.
- Marschner, P. Marschner’s Mineral Nutrition of Higher Plants. Academic Press.